
Ce que les fossiles révèlent sur le mouvement, et ce qu’ils ne disent pas sur nos douleurs
Comparer Homo habilis et Homo erectus aide à comprendre une partie de l’histoire de notre corps. Les proportions des membres, la taille et les possibilités de déplacement ont changé au cours de l’évolution. Mais cette histoire ne ressemble pas à une échelle où chaque espèce serait plus parfaite que la précédente. Les fossiles montrent de la diversité, des coexistences et des connaissances encore incomplètes.[1] [2] [3]
Pour un lecteur d’Osteomag, l’intérêt est de distinguer trois questions: comment nos ancêtres se déplaçaient-ils, quelles hypothèses expliquent leurs adaptations, et comment accompagner aujourd’hui une personne douloureuse? Les réponses ne relèvent pas des mêmes preuves. Une reconstruction du passé n’identifie pas la cause d’un mal de dos et ne démontre pas l’efficacité d’une technique de soin.
Le repère essentiel
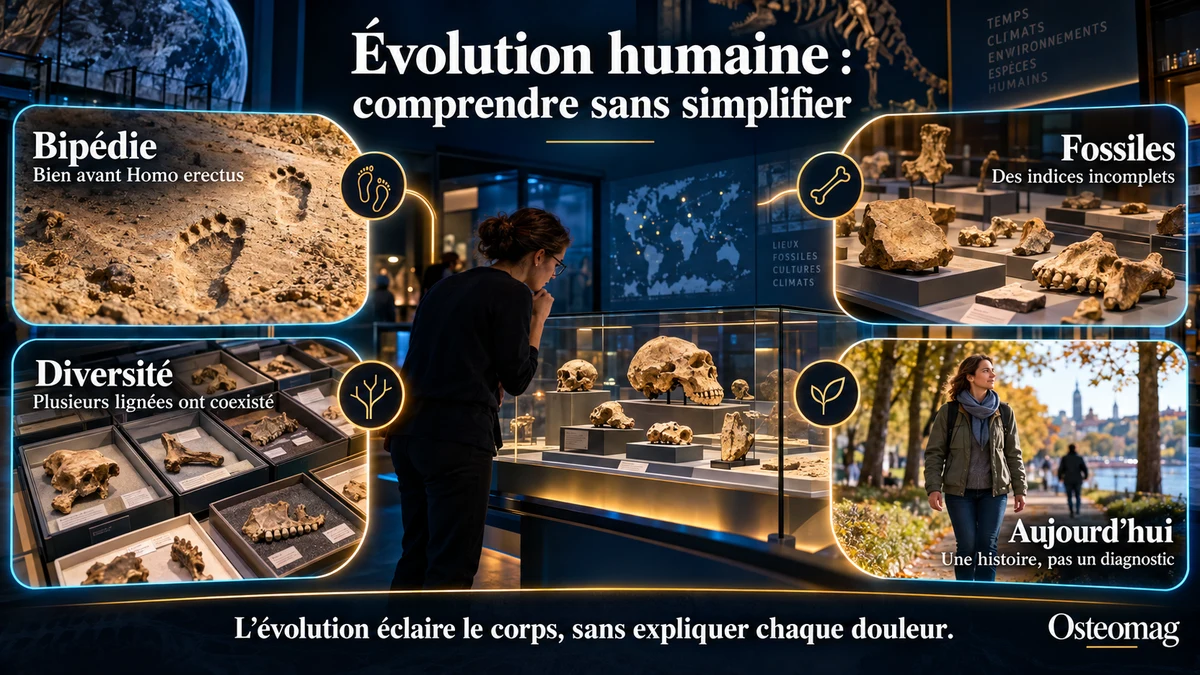
La bipédie existait bien avant Homo erectus. Homo habilis et Homo erectus ont coexisté. Leur comparaison éclaire des adaptations et des variations; elle ne permet pas de diagnostiquer une douleur actuelle ni de définir une posture idéale.
Une histoire ramifiée plutôt qu’un passage obligatoire
Homo habilis est l’un des premiers représentants nommés du genre Homo. Les fossiles qui lui sont attribués viennent notamment d’Afrique orientale. Homo erectus, dans son acception large, rassemble des populations présentes sur une très longue période et dans plusieurs régions d’Afrique et d’Asie. Certains chercheurs distinguent les formes africaines sous le nom d’Homo ergaster. Ces choix de classification font partie du travail scientifique.[1] [2]
Le scénario où habilis disparaîtrait exactement au moment où erectus apparaît ne correspond pas aux découvertes d’Ileret, au Kenya. Les fossiles étudiés par Spoor et ses collègues indiquent une coexistence prolongée. Cela ne résout pas toutes les relations de parenté, mais contredit une succession strictement linéaire. Plusieurs façons de vivre et plusieurs morphologies ont pu partager des environnements proches.[3]
Les dates attribuées à une espèce décrivent une présence connue dans les archives fossiles. Elles ne fixent pas nécessairement son premier jour d’existence ni sa disparition exacte. Un nouveau fossile peut étendre cet intervalle ou modifier une attribution. Présenter des périodes approximatives comme des repères, plutôt que comme des frontières absolues, respecte cette incertitude et rend les mises à jour plus compréhensibles.
La marche sur deux jambes précède ces deux espèces
La bipédie est attestée chez des hominines bien antérieurs à Homo erectus. Les australopithèques présentent déjà des indices de déplacements sur deux jambes. Les traces de pas et les os apportent des informations complémentaires: une empreinte renseigne sur un contact avec le sol, tandis qu’un bassin ou un fémur suggère certaines possibilités mécaniques. Aucune de ces pièces ne constitue à elle seule un film complet de la marche.[4]
Il est donc trompeur de représenter habilis comme un animal constamment courbé qui aurait appris à se redresser en devenant erectus. La discussion porte notamment sur les proportions, le degré de vie terrestre et la place éventuelle des activités arboricoles. Une posture légèrement fléchie dans une illustration artistique n’est pas une mesure scientifique. Les deux espèces doivent être comprises dans un ensemble beaucoup plus ancien d’adaptations locomotrices.[4] [5]
Les proportions corporelles : un puzzle incomplet
Les fossiles d’erectus montrent généralement des membres inférieurs relativement longs, dans une organisation corporelle plus proche de la nôtre que celle de nombreux hominines antérieurs. Cela intéresse la biomécanique des déplacements terrestres. Toutefois, les individus varient: une espèce présente sur de vastes territoires et pendant longtemps ne peut pas être résumée par une silhouette unique ou une taille standard.[2]
Chez habilis, les restes du corps sont rares et souvent fragmentaires. Reconstruire la longueur d’un membre à partir d’un morceau d’os demande des comparaisons et introduit une marge d’incertitude. Une analyse publiée en 2004 a réexaminé les reconstructions de proportions, montrant l’importance des modèles utilisés. Le débat ne se réduit donc pas à mesurer deux squelettes parfaitement conservés.[5]
En 2026, Grine et ses collègues ont décrit KNM-ER 64061, un squelette partiel d’environ deux millions d’années attribué à habilis. Les restes comprennent surtout des éléments du haut du corps et des fragments du bassin. Ils soutiennent l’existence d’avant-bras relativement longs et d’une combinaison de caractéristiques anciennes. Les membres inférieurs manquent: cette découverte enrichit la comparaison sans donner une description complète de la démarche.[6]
Marche, course et endurance : des hypothèses à distinguer
Des jambes relativement longues peuvent participer à l’organisation de la foulée et des déplacements. L’économie locomotrice dépend cependant aussi des masses corporelles, des articulations, des muscles, de la vitesse et du terrain. Déduire la quantité exacte d’énergie dépensée par habilis ou erectus à partir d’une illustration serait impossible. Les chercheurs combinent anatomie, modèles et comparaisons avec des organismes actuels.
Bramble et Lieberman ont proposé que certaines caractéristiques du genre Homo favorisent la course d’endurance et aient joué un rôle dans son évolution. Cette hypothèse mobilise plusieurs traits anatomiques et physiologiques. Elle ne signifie pas que tous les individus d’erectus couraient constamment, ni que la chasse à l’épuisement explique chaque caractéristique humaine. Un avantage possible et un comportement directement documenté sont deux niveaux de conclusion différents.[7]
Les empreintes d’Ileret, datées d’environ 1,5 million d’années, constituent un autre type d’indice. Leur morphologie a été rapprochée d’un pied et d’un déplacement relativement modernes. L’attribution aux hominines concernés repose sur un contexte et des comparaisons. Ces traces apportent une observation précieuse, mais n’autorisent pas à reconstituer toutes les habitudes d’une espèce à partir d’un seul épisode de marche.[8]
Ce que l’on peut comparer avec prudence
| Question | Indices disponibles | Limite de l’interprétation |
|---|---|---|
| Parenté entre habilis et erectus | Fossiles datés, ressemblances et coexistence | Une succession directe unique n’est pas démontrée |
| Proportions corporelles | Longueurs reconstruites et fragments osseux | Échantillons réduits, variations et os manquants |
| Déplacements | Anatomie du bassin, des membres et empreintes | Les activités quotidiennes ne sont pas entièrement observables |
| Endurance | Comparaisons anatomiques et physiologiques | Hypothèses fonctionnelles, sans mesure directe chez ces espèces |
| Outils et feu | Objets et traces archéologiques dans leur contexte | Le fabricant ou l’utilisateur n’est pas toujours identifié |
| Douleur moderne | Examen, histoire et données cliniques actuelles | Un récit évolutif ne remplace pas une évaluation individuelle |
Les outils et le feu ne définissent pas une échelle du progrès
Le nom habilis, associé à l’habileté, reflète l’histoire de sa découverte et l’idée d’un lien avec les outils. Il ne prouve pas que cette espèce en aurait été l’unique inventeur. Les outils de Lomekwi 3, vieux d’environ 3,3 millions d’années, précèdent les premiers fossiles couramment attribués au genre Homo. Le fabricant n’est pas directement identifié par les objets eux-mêmes.[9]
Les bifaces acheuléens sont souvent associés aux premiers erectus, mais les traditions techniques ne se superposent pas simplement aux frontières des espèces. Quant au feu, les traces doivent être distinguées d’une maîtrise généralisée, régulière et orientée vers la cuisson. L’étude de Wonderwerk a documenté des restes brûlés à l’intérieur d’une grotte vers un million d’années. Elle ne démontre pas que tous les erectus cuisinaient dès leur apparition.[2] [10]
Le bassin et la naissance : un débat plus complexe
Le « dilemme obstétrical » désigne un ensemble d’hypothèses sur les contraintes qui ont influencé le bassin et la naissance humaine. Le raccourci « un bassin étroit pour marcher, une grosse tête difficile à faire passer » résume mal les connaissances. Une étude sur des adultes actuels n’a pas retrouvé la relation attendue entre largeur pelvienne et coût énergétique de la marche ou de la course.[11]
D’autres travaux ont mis l’accent sur les contraintes énergétiques de la grossesse. Des synthèses défendent néanmoins la pertinence de compromis évolutifs, dans une formulation plus complexe que le modèle initial. Les dimensions du canal, la croissance, les tissus et la diversité humaine interagissent. Ce débat scientifique n’autorise pas à annoncer qu’un soin manuel élargit le bassin ou sécurise l’accouchement; les besoins obstétricaux relèvent d’un suivi spécifique.[12] [13]
Pourquoi l’évolution ne suffit pas à expliquer le mal de dos
La colonne, le genou et le pied participent à une locomotion capable de porter et déplacer le corps. Ils ne sont pas simplement des pièces défectueuses condamnées par la bipédie. Dans une douleur actuelle interviennent la situation de santé, les charges, les capacités, les expériences et le contexte de vie. Le fait qu’une structure ait une histoire évolutive ne dit pas pourquoi elle devient douloureuse aujourd’hui.[14]
La douleur n’est pas une mesure directe d’une « mauvaise adaptation ». Des modifications observées sur les images existent aussi chez des personnes sans symptômes. À l’inverse, une douleur peut être importante sans anomalie permettant à elle seule de l’expliquer. Cela invite à examiner les signes, les difficultés et l’évolution plutôt qu’à attribuer automatiquement le problème à une courbure ou à un prétendu défaut ancestral.[14] [15]
Des applications utiles, sans promesse de correction du corps
Pour l’ostéopathie, l’évolution constitue un cadre de réflexion sur les relations entre forme, mouvement et environnement. Elle ne valide pas une méthode de palpation, un diagnostic à distance ou une technique particulière. Un changement de sensation après un contact manuel ne démontre pas une correction de millions d’années d’évolution. Les décisions de soin doivent s’appuyer sur les données cliniques et les objectifs de la personne.[16]
La conséquence pratique la mieux étayée est de soutenir des possibilités de mouvement adaptées. Marcher, varier les activités et développer progressivement des capacités peuvent contribuer à la santé, sans chercher à reproduire la vie supposée d’un ancêtre. Les recommandations actuelles d’activité physique reposent sur l’étude des personnes vivantes. Elles n’exigent ni une démarche unique ni une pratique de course imposée à tout le monde.[17]
Une douleur persistante ou inhabituelle mérite une évaluation contemporaine: circonstances de début, retentissement, symptômes associés et signes nécessitant une orientation. Un traumatisme, une faiblesse progressive ou une altération générale ne doivent pas être expliqués par la seule évolution. L’histoire de notre espèce est passionnante; le suivi d’une personne se construit avec ses besoins présents, des explications compréhensibles et des limites clairement reconnues.
Une lecture qui reste ouverte
Les fossiles apportent des observations, les modèles proposent des explications et les études cliniques orientent les soins. Garder ces trois niveaux distincts permet d’apprécier l’évolution humaine sans en faire un récit de fragilité inévitable.
Références
- Smithsonian Human Origins Program. Homo habilis.
- Smithsonian Human Origins Program. Homo erectus.
- Spoor F et al. Implications of new early Homo fossils from Ileret, east of Lake Turkana, Kenya. Nature, 2007;448:688–691.
- Smithsonian Human Origins Program. Walking Upright.
- Haeusler M, McHenry HM. Body proportions of Homo habilis reviewed. Journal of Human Evolution, 2004;46:433–465.
- Grine FE et al. New partial skeleton of Homo habilis from the upper Burgi Member, Koobi Fora Formation, Ileret, Kenya. The Anatomical Record, 2026;309:485–545.
- Bramble DM, Lieberman DE. Endurance running and the evolution of Homo. Nature, 2004;432:345–352.
- Bennett MR et al. Early hominin foot morphology based on 1.5-million-year-old footprints from Ileret, Kenya. Science, 2009.
- Harmand S et al. 3.3-million-year-old stone tools from Lomekwi 3, West Turkana, Kenya. Nature, 2015.
- Berna F et al. Microstratigraphic evidence of in situ fire in the Acheulean strata of Wonderwerk Cave. PNAS, 2012.
- Warrener AG et al. A wider pelvis does not increase locomotor cost in humans, with implications for the evolution of childbirth. PLOS ONE, 2015.
- Dunsworth HM et al. Metabolic hypothesis for human altriciality. PNAS, 2012.
- Haeusler M et al. The obstetrical dilemma hypothesis: there’s life in the old dog yet. Biological Reviews, 2021.
- Raja SN et al. The revised IASP definition of pain: concepts, challenges, and compromises. Pain, 2020.
- Brinjikji W et al. Systematic literature review of imaging features of spinal degeneration in asymptomatic populations. AJNR, 2015.
- Bialosky JE et al. The mechanisms of manual therapy in the treatment of musculoskeletal pain: a comprehensive model. Manual Therapy, 2009.
- Organisation mondiale de la Santé. Activité physique. Fiche d’information, 2024.